文章中心
了解、体验、感悟、分享——汇聚平台使用教程与科研动态。
瘤胃微生物组如何帮助反刍动物适应高海拔:牦牛与荷斯坦牛的多组学比较
原文:The role of the gut microbiome in the regulation of high-altitude adaptation.
期刊:iMeta(影响因子 44.4) | PubMed | PMC 全文(含 PDF)
高海拔环境对哺乳动物的生存构成了严峻挑战:低氧分压、低温以及强烈的紫外线辐射,使得动物必须面对缺氧和代谢需求上升的双重压力。对于反刍动物而言,它们依赖瘤胃中的微生物群落将人类无法直接消化的植物纤维发酵为挥发性脂肪酸(VFAs),这些脂肪酸随后被瘤胃上皮吸收,成为宿主主要的能量来源。因此,在能量需求本就更高的高海拔地区,一套稳定而高效的“微生物—上皮”供能系统,可能是动物能否适应当地环境的关键。
过去关于高海拔适应的研究,大多集中在宿主自身的基因组、DNA甲基化和生理形态上,例如牦牛(Bos grunniens)在约7300年前被驯化后,演化出优于低海拔牛种的纤维消化和氮利用能力。然而,胃肠道微生物组在其中的作用仍不清楚。已有零星研究提示,牦牛瘤胃中VFA发酵通路更丰富、上皮吸收效率更高,但这些结果往往受到饮食和海拔因素的干扰,难以厘清微生物本身的贡献。
为了回答这一问题,一项发表在 iMeta(影响因子44.4)上的研究以牦牛和荷斯坦牛(Bos taurus)为模型,采用多组学方法系统比较了二者在相同高海拔饲养条件下的瘤胃微生物与上皮细胞功能,并通过瘤胃液移植实验验证了微生物组的因果作用。
研究背景:为什么“能量供应”是高海拔适应的核心
反刍动物能把低价值的植物生物量转化为营养丰富的肉和奶,这一过程完全依赖瘤胃微生物:它们通过生化通路把植物细胞壁碳水化合物发酵成VFAs,再由瘤胃分层鳞状上皮吸收和代谢。VFAs是反刍动物代谢的主要能源。如果瘤胃微生物组成或上皮细胞功能发生改变,就会影响能量供应,进而影响生长和产奶等生产性能。
研究指出,高海拔地区奶牛的生产效率低于低海拔地区,说明在极端环境下维持足够且持续的能量供应至关重要。牦牛作为长期进化形成的高海拔适应模型,能在营养贫乏、纤维难消化的本地植被上繁荣生存;而荷斯坦牛是纯低地起源、为高性能产奶培育的品种。两者都在约4000米海拔从出生起饲养,因此比较它们,可以揭示“适应”与“未适应”策略在瘤胃系统中的差异。
核心发现一:牦牛瘤胃微生物更偏向中心碳代谢,而非单纯降解复杂碳水
研究首先让20头牦牛和20头荷斯坦牛在相同饮食下饲养44天,以消除短期营养和海拔适应效应。随后对瘤胃液进行宏基因组测序,共获得701 Gb数据。结果显示,两组在古菌和细菌的物种组成上显著分离。
在功能层面,牦牛瘤胃微生物显著富集于碳代谢,尤其是中心碳代谢通路,如糖酵解/糖异生、丙酮酸代谢和磷酸戊糖途径;而荷斯坦牛则富集于淀粉、蔗糖、戊糖和葡萄糖醛酸相互转化等通路。
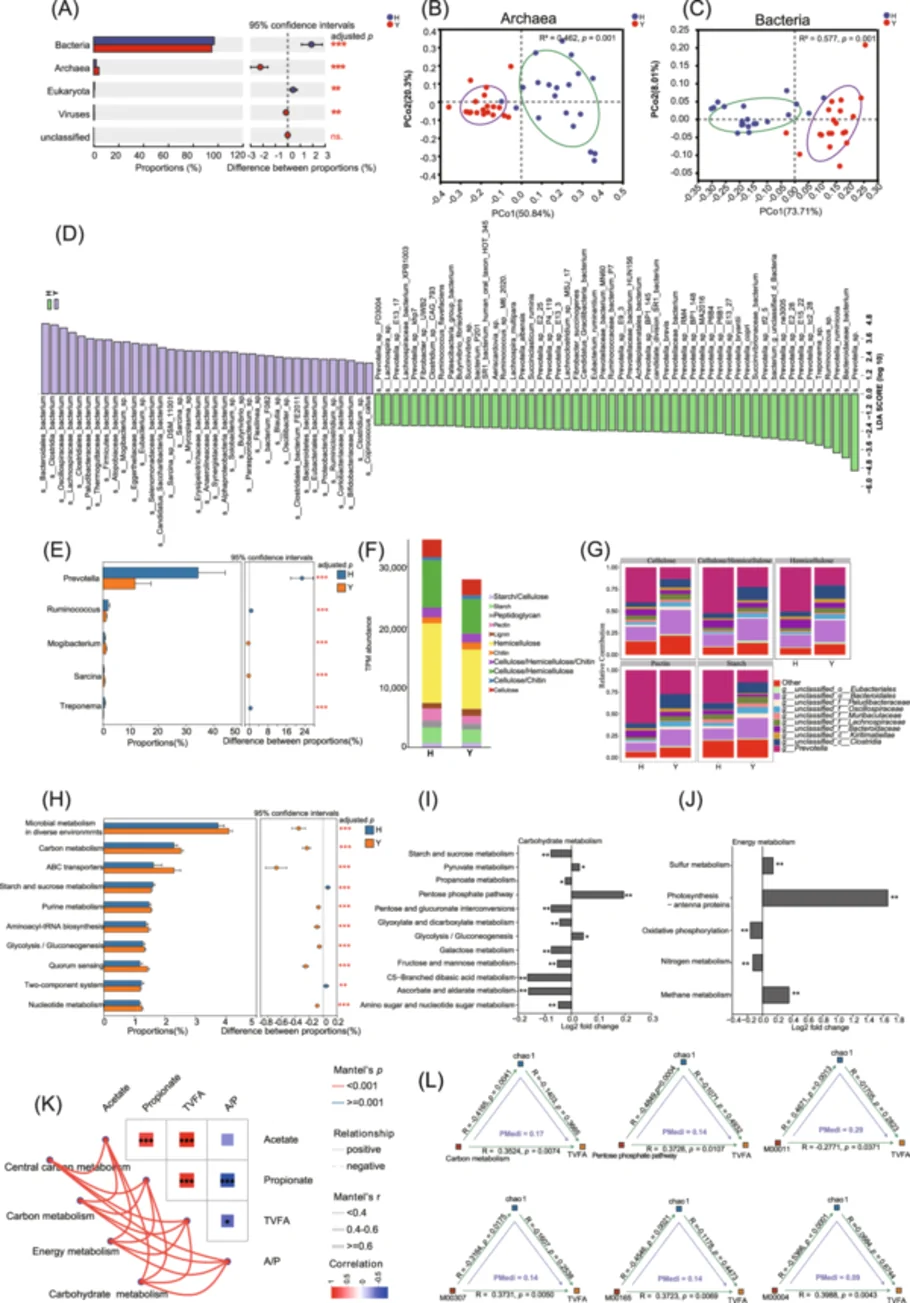
进一步分析碳水化合物活性酶(CAZymes)发现:荷斯坦牛拥有更多针对肽聚糖、果胶、淀粉、纤维素和半纤维素的降解酶基因;牦牛虽然总体碳水化合物降解酶基因丰度较低,但在木质素和几丁质相关功能上更高,并且富集糖基转移酶(GTs)、碳水化合物酯酶(CEs)等。KEGG分析也显示,在能量代谢方面,牦牛富集甲烷和硫代谢,而荷斯坦牛富集氧化磷酸化和氮代谢。
发酵指标上,牦牛瘤胃液总VFA浓度显著高于荷斯坦牛(p<0.01),乙酸/丙酸比有降低趋势(3.5:1 vs 3.8:1),但血清葡萄糖水平无显著差异。Mantel分析表明,碳代谢、中心碳代谢、碳水化合物代谢和能量代谢均与VFA浓度正相关。中介效应模型进一步显示,碳代谢、磷酸戊糖途径以及若干菌属通过影响群落Chao1指数,最终关联到总VFA和A/P比。
核心发现二:宏转录组揭示“活跃表达”的功能差异
仅看基因潜力还不够,研究又对10头牦牛和10头荷斯坦牛进行宏转录组测序,获得358 Gb数据,以观察微生物实际活跃表达的基因。
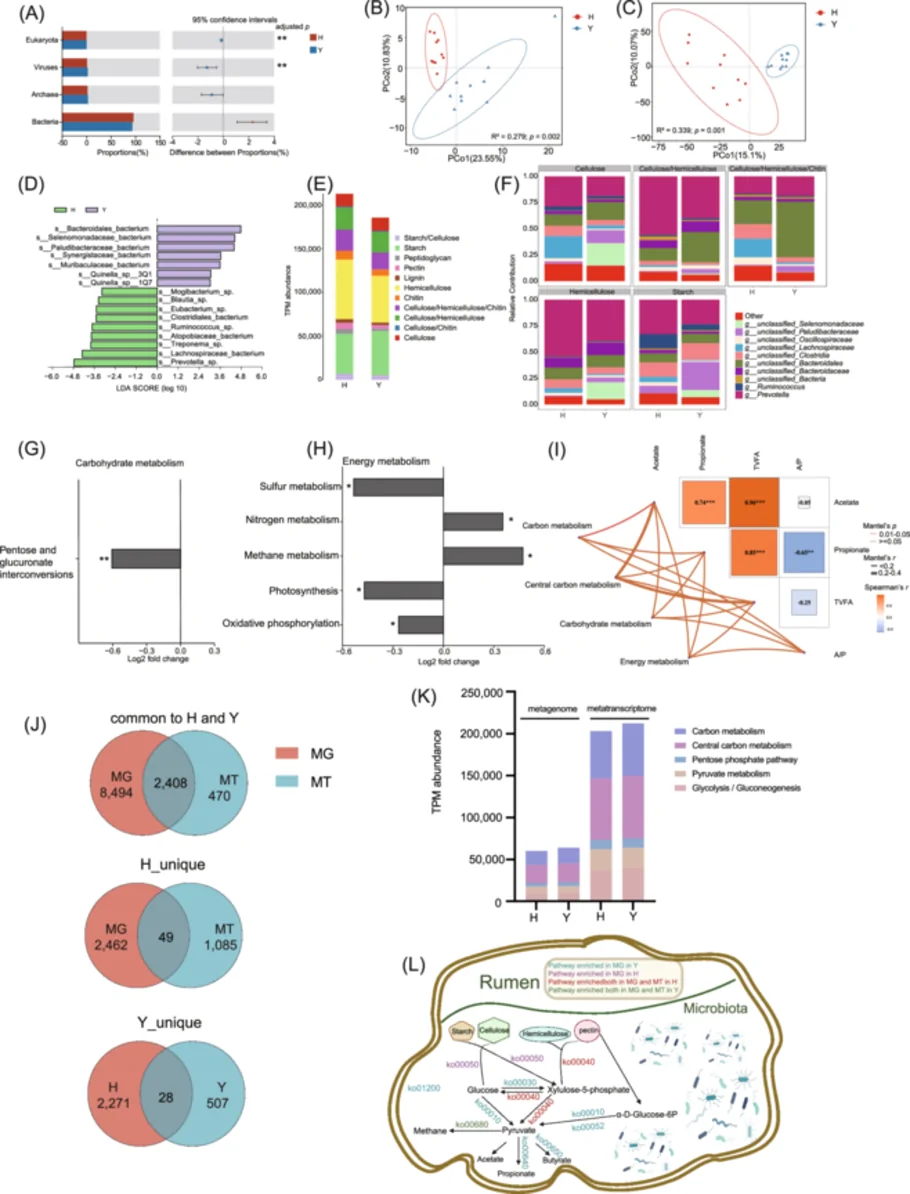
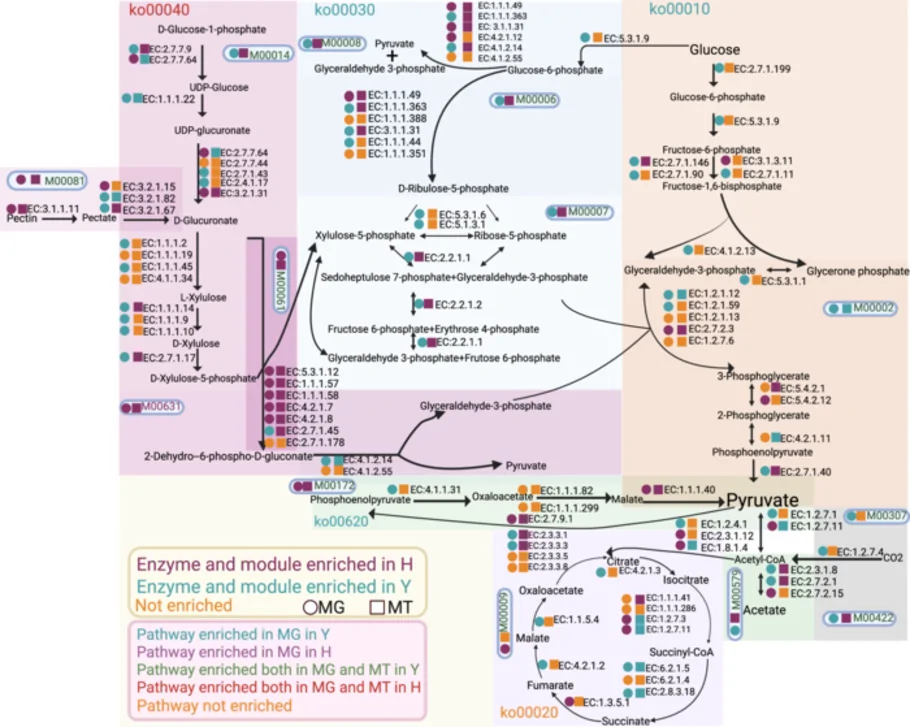
虽然两组在整体物种多样性指数上无显著差异,但古菌和细菌的活跃群落结构仍明显分开。宏转录组与宏基因组联合分析表明,牦牛中上调的关键通路集中在中心碳代谢模块及相关酶,而荷斯坦牛则在复杂碳水化合物降解相关通路上更活跃。图3总结了基于两组学数据绘制的中心碳代谢模块、关键酶以及碳水化合物和能量代谢通路图谱。
核心发现三:瘤胃上皮细胞在单核水平呈现不同代谢程序
微生物产生的VFA需要被瘤胃上皮吸收和利用。研究利用单核RNA测序(snRNA-seq)对瘤胃上皮细胞进行图谱构建(每组n=3)。
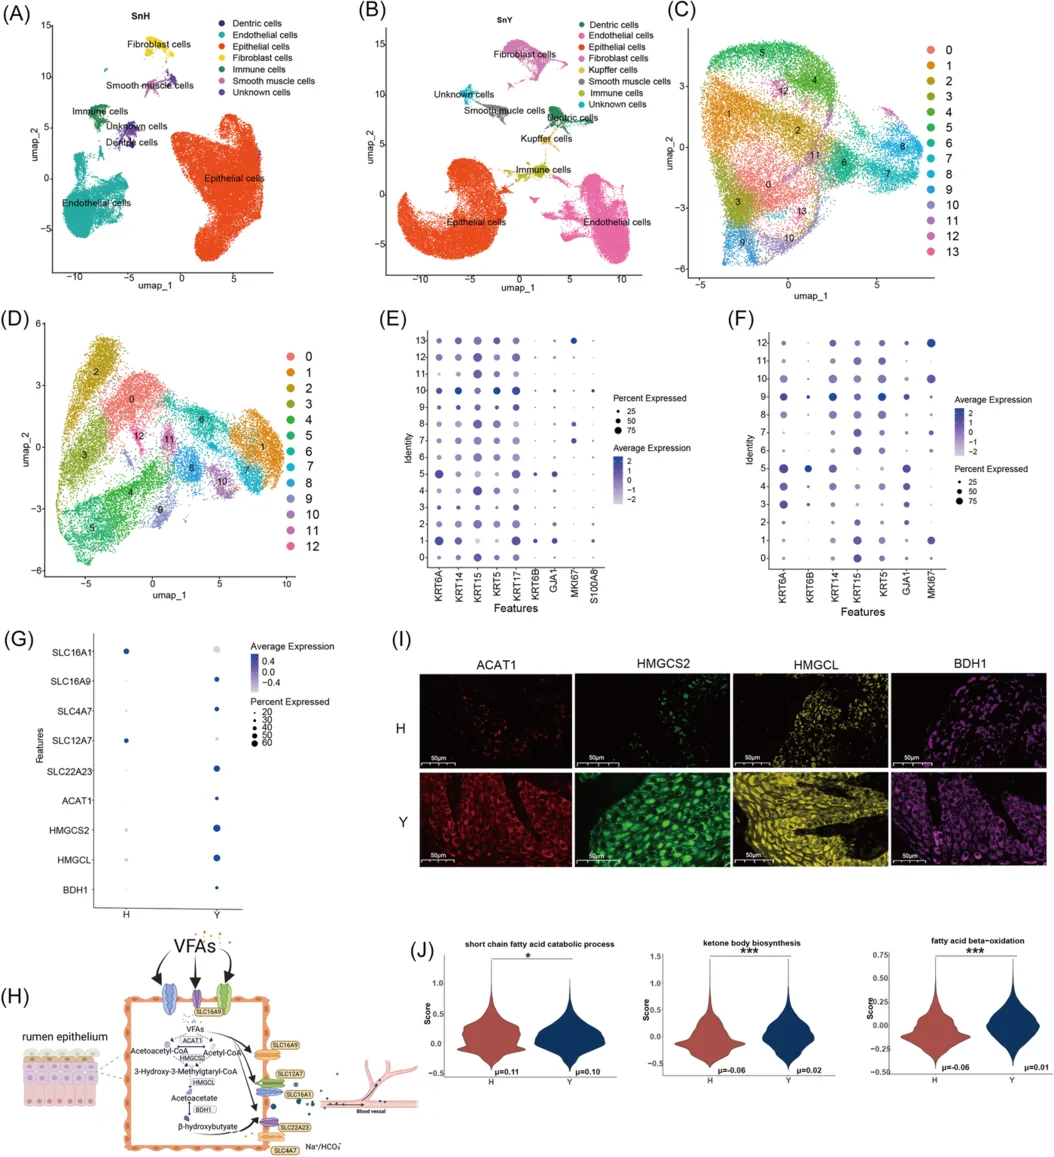
结果显示,与终生饲养在高海拔的荷斯坦牛相比,牦牛的瘤胃上皮细胞在酮体合成和脂肪酸β-氧化方面得分更高。这意味着牦牛上皮不仅接收来自微生物的VFA,还具备更强的下游氧化供能能力,从而在缺氧和低温条件下维持能量稳态。
核心发现四:把牦牛瘤胃液移植给荷斯坦牛,可改善生产性能
为了验证因果关系,研究者将10头牦牛的混合瘤胃液移植给10头荷斯坦牛。移植后,荷斯坦牛表现出更好的产奶性能。同时在移植后6小时、7天和28天检测发现,受体牛的碳代谢活性呈进行性下降,说明牦牛来源的微生物功能随时间发生变化,但早期已足以影响宿主表型。
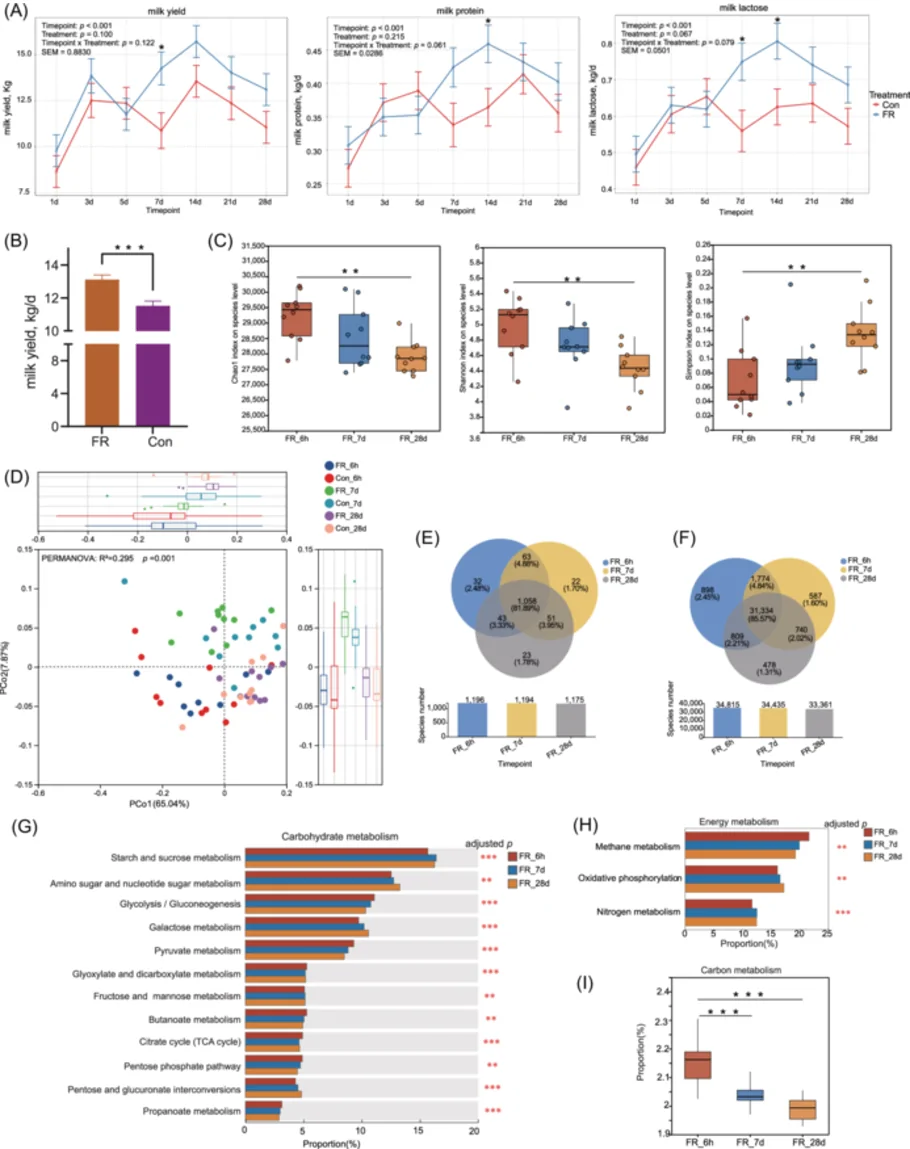
这一移植实验直接证明:瘤胃微生物组本身能够传递高海拔适应相关的能量代谢优势,而不只是宿主基因或长期环境暴露的结果。
方法亮点:多组学+单核测序+移植验证的闭环设计
该研究的技术路线具有明显创新:首先用宏基因组看“微生物有什么功能潜力”,再用宏转录组看“哪些功能真正被表达”,接着用单核RNA测序在细胞类型分辨率上解析宿主上皮的响应,最后用瘤胃液移植进行功能验证。图6展示了整体研究队列设计与分析流程。
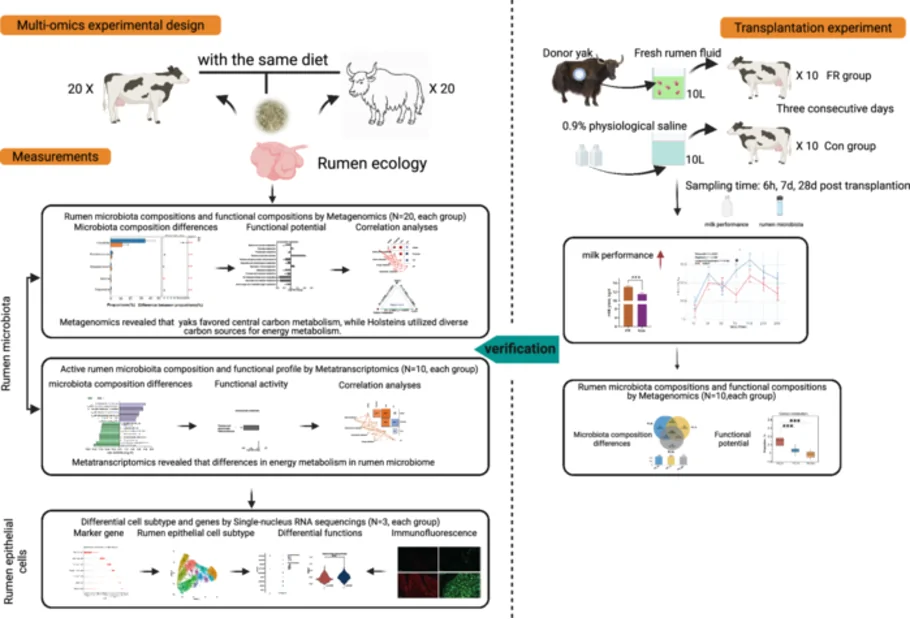
此外,研究严格控制了变量:所有动物自出生起就在约4000米海拔饲养,并在采样前统一饮食44天,从而把“微生物组差异”从饮食和急性海拔效应中剥离出来。大规模测序数据(宏基因组701 Gb、宏转录组358 Gb)也为统计可靠性提供了支撑。
应用意义:从反刍动物适应到哺乳动物微生物组研究
这项研究说明,高海拔适应不仅是宿主基因组的事,也是“瘤胃微生物—上皮细胞”协同供能的结果。牦牛通过富集中心碳代谢的微生物功能,配合上皮细胞更强的酮体合成和脂肪酸氧化,实现了在极端环境下的能量保障。
对科研而言,该成果补充了以往以缺氧为中心的反刍动物和单胃动物(包括人类)研究,提示其他永久生活在高海拔的哺乳动物,其肠道微生物组可能也存在类似的能量代谢适应机制。对畜牧业来说,通过调控或移植瘤胃微生物来改善高海拔地区家畜的生产性能,具有潜在应用价值。
总之,这篇论文把“微生物组如何参与环境适应”从相关性推向了因果性,为理解宿主—微生物共适应提供了多组学范式下的新证据。
本文图片转载自 PMC 开放获取全文,仅供学习参考,请以原文为准。